La información molecular no se preserva automáticamente. La replicación, la mutación, el acoplamiento catalítico y la ventaja selectiva son propiedades especificadas de sistemas químicos particulares, no atributos globales de materia arbitraria. Una vez que existe un sistema replicativo, su capacidad de conservar una secuencia con significado depende de un equilibrio cuantitativo: los errores introducidos durante la copia deben ser tolerados por la ventaja selectiva que la secuencia con significado posee sobre su nube de mutantes.
Para una secuencia maestra de longitud vₘ, una fidelidad media por símbolo q̄ₘ y una ventaja selectiva σₘ sobre el mutante promedio, la condición de mantenimiento es
q̄ₘvₘ · σₘ > 1
Aquí q̄ₘvₘ es la probabilidad de que una copia completa esté libre de errores, y disminuye exponencialmente a medida que vₘ crece. El factor σₘ es el margen selectivo que tolera las copias erróneas que, no obstante, se conservan. El umbral de error es la frontera q̄ₘvₘ · σₘ = 1.
Interpretación de la relación del umbral
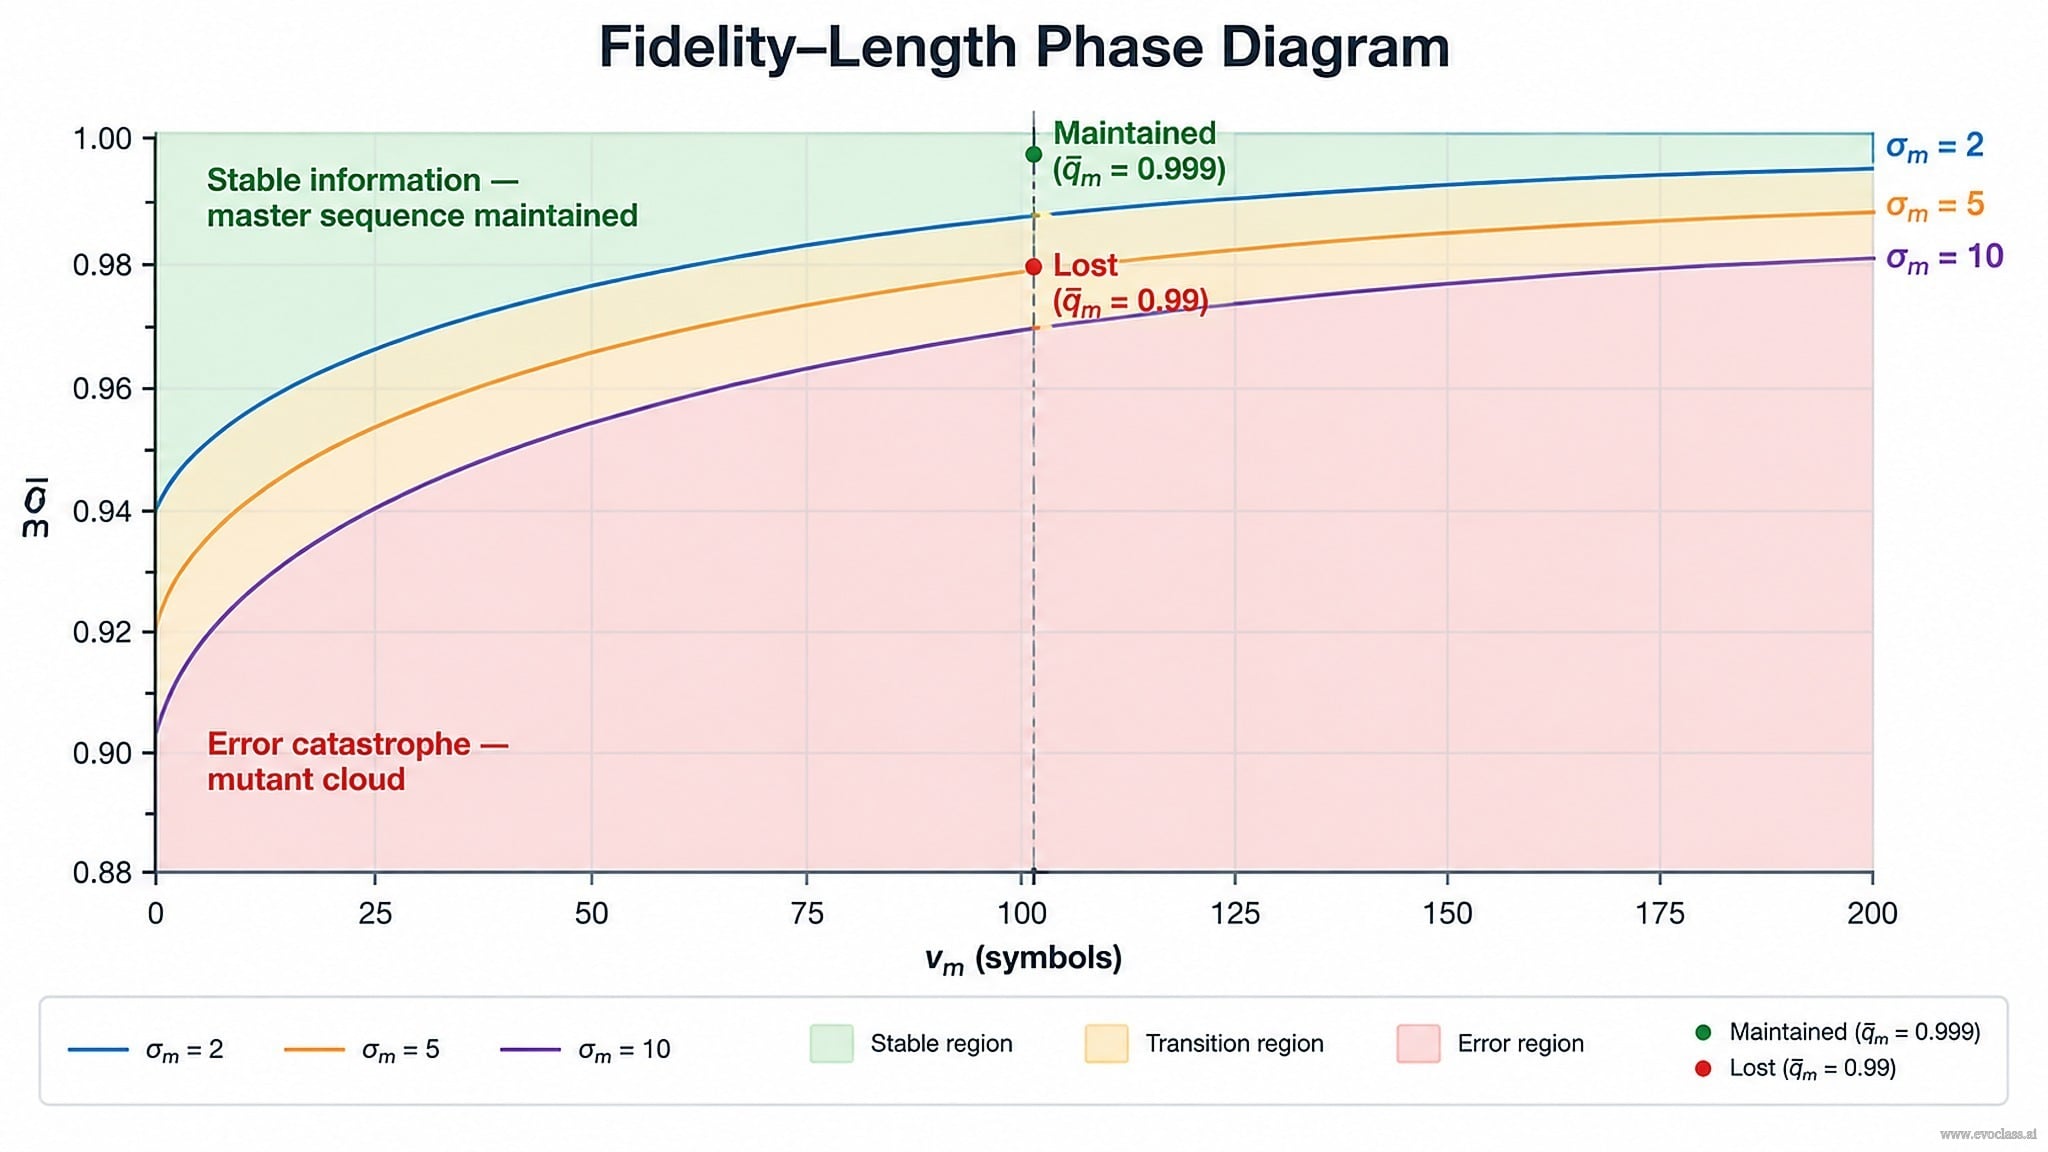
Reordenada, la frontera se expresa como q̄ₘ > σₘ−1/vₘ. La fidelidad, la longitud y la ventaja selectiva son, por tanto, decisivas en conjunto: ninguna de ellas puede elegirse con independencia de las otras dos.
- Fidelidad media q̄ₘ — la probabilidad promedio de copiar correctamente un símbolo.
- Longitud de la secuencia vₘ — el número de símbolos que deben copiarse todos correctamente.
- Ventaja selectiva σₘ — cuánto más rápido se replica la secuencia maestra que el miembro promedio de su nube de mutantes.
Por encima y por debajo del umbral
Por encima del umbral, la selección localiza la población en torno a la secuencia con significado: se mantiene un pico estable de cuasiespecie, y la mayoría de los individuos aún descienden de la secuencia maestra. Por debajo del umbral, la secuencia maestra no puede distinguirse de sus mutantes; la población se deslocaliza en una amplia distribución de mutantes y la información codificada se pierde — la catástrofe de error.
La transición se asemeja a una transición de fase. Separa un estado ordenado, portador de información, de una nube desordenada de mutantes, en lugar de describir un declive gradual.
Por qué la longitud y la ventaja se compensan mutuamente
Como q̄ₘvₘ es exponencial en vₘ, las secuencias más largas exigen una fidelidad exponencialmente mayor. Una σₘ mayor, en cambio, permite una vₘ más larga o una q̄ₘ más baja. Esta compensación limita la longitud de los primeros replicadores: con una fidelidad prebiótica realista, solo podían mantenerse secuencias cortas, lo que motiva una organización de nivel superior como los hiperciclos, en los que varios replicadores cortos se enlazan en una red seleccionada conjuntamente.
Ejemplo resuelto
Tomemos vₘ = 100 y σₘ = 2. Con q̄ₘ = 0.99, q̄ₘvₘ ≈ 0.366 y σₘ · q̄ₘvₘ ≈
Supuestos y límites
El umbral clásico supone poblaciones grandes, organización constante y un paisaje de aptitud de un solo pico. Las poblaciones finitas, la neutralidad, las mutaciones compensatorias y los paisajes accidentados difuminan la transición, pero no eliminan la restricción subyacente.
Diagrama de fases fidelidad–longitudCurvas de umbral q̄ₘ = σₘ^(−1/vₘ) para σₘ = 2, 5 y 10 representadas frente a la longitud de la secuencia vₘ. Por encima de una curva, la selección localiza la población en la secuencia maestra; por debajo de ella, la población se deslocaliza en una amplia nube de mutantes. Una σₘ mayor reduce la fidelidad necesaria a una longitud dada, y los dos puntos marcados en vₘ = 100 muestran cómo el cambio de q̄ₘ de 0.99 (perdida) a 0.999 (mantenida) cruza la frontera.